Las abejas africanizadas forman parte de la apicultura en gran parte de América desde hace décadas....
La abeja negra ibérica (Apis mellifera iberiensis) es la subespecie de abeja melífera propia de la Península Ibérica. Su nombre parece describirla con sencillez: una abeja oscura, propia de este territorio. Sin embargo, cuando observamos su genética, la historia resulta mucho más compleja.
No todas las abejas ibéricas tienen que ser completamente negras. Dentro de la propia subespecie existe variación en la pigmentación y una abeja con algunas zonas amarillentas puede seguir perteneciendo genéticamente a Apis mellifera iberiensis. Del mismo modo, una abeja completamente negra no demuestra, solo por su aspecto, que esté libre de introgresión de otras poblaciones.
Esa variación no se limita al color. Las poblaciones de A. m. iberiensis presentan una importante diversidad genética y diferencias entre regiones de la Península, resultado de su historia evolutiva y de la adaptación a ambientes muy distintos.
Por eso, entender qué es realmente la abeja negra ibérica exige ir más allá de una lista de características como el color, la defensividad, la productividad o la resistencia a las enfermedades.
En este artículo veremos qué sabemos actualmente sobre su origen y diversidad genética, por qué pueden coexistir linajes mitocondriales diferentes dentro de la misma subespecie, qué significa realmente su adaptación local, qué características apícolas están respaldadas por la evidencia y qué podemos perder cuando aumenta la introgresión de material externo.
La pregunta de partida es más sencilla: ¿qué significa realmente que una abeja sea Apis mellifera iberiensis?
¿Qué es la abeja negra ibérica?
La abeja negra ibérica es Apis mellifera iberiensis, una de las subespecies de la abeja melífera occidental, Apis mellifera. Evolucionó en la Península Ibérica y constituye la población nativa característica de este territorio, principalmente en España y Portugal.
En publicaciones antiguas todavía puede aparecer como Apis mellifera iberica. Sin embargo, el nombre actualmente utilizado en la literatura científica es Apis mellifera iberiensis, y será el que utilizaremos en este artículo.
El término “abeja negra ibérica” se debe a su apariencia predominantemente oscura, pero funciona como un nombre común, no como una definición genética. Tampoco debe confundirse con Apis mellifera mellifera, habitualmente conocida como abeja negra europea y distribuida históricamente en amplias regiones al norte de los Pirineos. Ambas están evolutivamente relacionadas, pero son poblaciones distintas.
Hablar de A. m. iberiensis no implica hablar de una población uniforme. Las abejas de distintas regiones de la Península presentan diferencias genéticas y morfológicas que forman parte de la diversidad propia de la subespecie.
Por eso, reconocer a la abeja ibérica no consiste simplemente en buscar una abeja completamente negra.
La siguiente pregunta surge casi inevitablemente: ¿una abeja negra ibérica tiene que ser realmente negra?
¿La abeja negra ibérica tiene que ser completamente negra?
No. Aunque el nombre de abeja negra ibérica sugiere una abeja de color uniformemente oscuro, dentro de Apis mellifera iberiensis existe variación en la pigmentación del abdomen. Algunas obreras pueden presentar pequeñas zonas amarillentas o incluso bandas amarillas, sin que ello necesariamente signifique que procedan de cruces recientes con otras subespecies.
Esta relación se ha estudiado comparando el aspecto de las abejas con su información genética. En una investigación con A. m. iberiensis se clasificaron las obreras según cuatro patrones de pigmentación, desde individuos completamente negros hasta individuos con varias bandas amarillas. Después se analizaron puntos concretos del ADN que permiten estimar si parte de la genética procede de poblaciones del linaje C, grupo al que pertenecen subespecies como A. m. ligustica y A. m. carnica. En las abejas ibéricas, la cantidad de amarillo en el abdomen no permitió predecir el grado de introgresión.
El resultado se observó en ambas direcciones. Había abejas con bandas amarillas en las que se detectaba muy poca o ninguna introgresión con los marcadores moleculares utilizados y, al mismo tiempo, abejas completamente negras que sí mostraban introgresión. Por tanto, una pigmentación amarilla no demuestra que una abeja haya dejado de ser ibérica, del mismo modo que un abdomen completamente negro no garantiza su identidad genética.
La pigmentación tiene un componente genético, pero constituye solo uno de los muchos rasgos que observamos en una abeja. La apariencia externa no contiene información suficiente para reconstruir la composición de todo su genoma. Por eso, el color puede servir para describir a una obrera, pero no para determinar con seguridad su ancestralidad.
Esta diferencia tiene consecuencias importantes cuando se pretende conservar A. m. iberiensis. Si se descartan sistemáticamente las colonias que presentan algo de amarillo suponiendo que están hibridadas, se puede eliminar material perteneciente a la propia diversidad de la población ibérica. Y seleccionar únicamente las abejas más negras tampoco garantiza que se reduzca la introgresión. Precisamente por eso, conservar la abeja ibérica no consiste únicamente en conservar una apariencia.
El color ya nos muestra, por tanto, que A. m. iberiensis presenta una mayor variación de la que su nombre común podría sugerir. Pero esa diversidad va mucho más allá de la pigmentación y llega hasta la estructura genética de sus poblaciones.
Una subespecie, muchas poblaciones
Llamar a todas estas abejas Apis mellifera iberiensis no significa que sean genéticamente idénticas en toda la Península. Los estudios poblacionales muestran que existe una estructura geográfica interna, es decir, diferencias en la frecuencia de determinadas variantes genéticas entre unas regiones y otras.
Uno de los trabajos más amplios analizó 711 zánganos procedentes de distintas localidades de la Península Ibérica. Los resultados mostraron dos componentes genéticos principales cuya frecuencia cambia gradualmente a medida que nos desplazamos aproximadamente entre el noreste y el suroeste. No aparecen dos poblaciones separadas por una frontera clara, sino una transición progresiva entre unas zonas y otras.
Ese patrón volvió a aparecer cuando se analizaron posteriormente genomas completos de abejas procedentes de distintas regiones ibéricas. En algunos grupos, especialmente a lo largo de los transectos central y mediterráneo, determinados componentes genéticos disminuían o aumentaban gradualmente con la geografía, mientras que las poblaciones atlánticas mostraban, además, ciertas particularidades propias.
Esto no significa que existan varias subespecies en la Península. Las diferencias genéticas entre las poblaciones son relativamente pequeñas y existe intercambio de genes entre ellas. Sin embargo, en esa continuidad se observa una estructura geográfica lo suficientemente consistente como para repetirse al utilizar distintos tipos de información.
De hecho, un estudio posterior mostró que las diferencias en la geometría de las alas de obreras y zánganos varían entre regiones y siguen un patrón geográfico muy similar al detectado mediante el análisis del ADN. Es decir, parte de esa estructura genética también se corresponde con diferencias morfológicas medibles entre las poblaciones.
La explicación más respaldada para esta organización no es simplemente que las abejas que viven más lejos hayan ido acumulando diferencias con el tiempo. Los análisis genéticos son más compatibles con una historia en la que poblaciones que permanecieron separadas durante periodos glaciales volvieron a entrar en contacto posteriormente. Al mezclarse de nuevo, dejaron una transición gradual que aún puede detectarse en las poblaciones actuales.
Por eso, encontrar diferencias genéticas entre abejas de distintas zonas de la Península no implica automáticamente la presencia de introgresión reciente de material importado. Una parte importante de esa variación forma parte de la propia historia evolutiva de A. m. iberiensis.
Ese patrón histórico sigue siendo reconocible a pesar del movimiento de colonias y del intercambio de material reproductivo asociado a la apicultura. Los estudios genómicos más recientes continúan detectando una estructura geográfica propia de las poblaciones ibéricas, lo que indica que esa diversidad no ha sido completamente borrada por el manejo moderno.
La diversidad interna de la abeja ibérica, por tanto, no debe interpretarse como una desviación de una supuesta población uniforme. Forma parte de lo que caracteriza a la propia subespecie.
Pero esta historia se vuelve aún más interesante cuando observamos el ADN que se transmite únicamente por vía materna. Dentro de A. m. iberiensis aparecen linajes mitocondriales tradicionalmente asociados tanto a África como a Europa occidental. Comprender por qué ocurre esto exige distinguir dos historias: la del ADN mitocondrial y la del ADN nuclear.
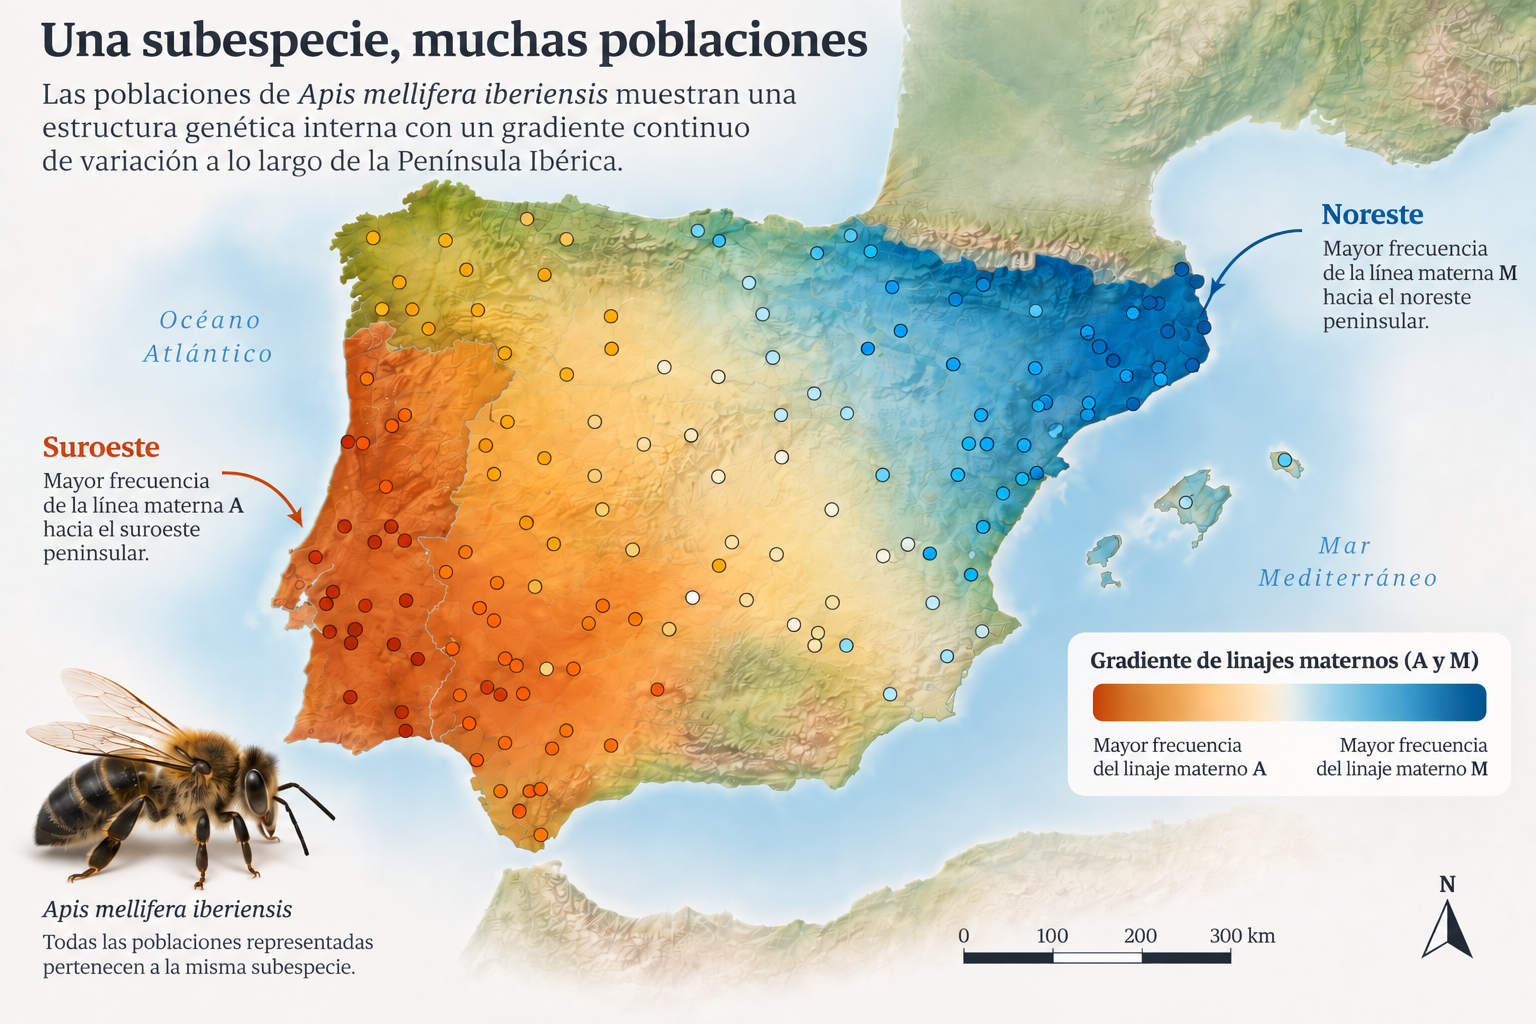 Figura 1. En Apis mellifera iberiensis, los linajes mitocondriales A y M presentan un gradiente geográfico: el linaje A es más frecuente hacia el suroeste de la Península y el linaje M hacia el noreste. Este esquema representa una tendencia poblacional, no una frontera entre dos tipos de abeja ibérica.
¿Es africana o europea? Lo que cuentan el ADN mitocondrial y el ADN nuclear
La estructura genética que vimos en la sección anterior se vuelve aún más interesante al observar dos partes distintas del ADN. El ADN nuclear contiene la mayor parte de la información genética de una abeja y, en las hembras, proviene tanto de la reina como del zángano. El ADN mitocondrial, en cambio, se transmite prácticamente únicamente por vía materna. Por eso, ambos pueden conservar señales distintas de la historia de una población.
Al estudiar el ADN mitocondrial de Apis mellifera iberiensis, se observan principalmente dos grandes linajes evolutivos: A, asociado históricamente a poblaciones africanas, y M, característico de poblaciones de Europa occidental. Estos linajes se distribuyen de manera desigual a lo largo de la Península. El linaje A es más frecuente hacia el suroeste y disminuye progresivamente hacia el noreste, mientras que el linaje M muestra el patrón inverso. En un estudio de más de 1.000 abejas ibéricas se identificaron 22 haplotipos mitocondriales diferentes: 10 del linaje A y 12 del linaje M.
La diversidad resultó ser aún mayor cuando se utilizaron métodos de secuenciación capaces de distinguir variantes antes pasadas por alto. Un estudio posterior identificó 164 haplotipos mitocondriales no descritos previamente: 113 pertenecientes al linaje A y 51 al linaje M. Dentro del linaje A, aparecieron además distintas sublíneas: AI, AII y AIII. Esta diversidad ha llevado a proponer que el contacto con poblaciones africanas pudo producirse en distintos momentos de la historia de las abejas ibéricas, y no mediante un único episodio.
Los datos más recientes siguen mostrando una presencia muy importante de las líneas maternas A. En un análisis basado en mitogenomas completos, el 68,2 % de los individuos ibéricos estudiados pertenecía al linaje mitocondrial A y el 31,8 % al M. Estas cifras describen la procedencia de sus líneas maternas; no significan que el 68,2 % del genoma de esas abejas sea africano.
¿Cómo llegaron esas líneas maternas africanas a la Península?
Los datos genéticos indican contactos muy antiguos entre las poblaciones de abejas del norte de África y las de la Península Ibérica. Una de las principales hipótesis propone una dispersión natural a través de la región del estrecho de Gibraltar durante el Pleistoceno, seguida de periodos de aislamiento, diferenciación y nuevos contactos entre poblaciones. Los análisis mitogenómicos modernos consideran a Gibraltar como una de las rutas por las que Apis mellifera pudo colonizar Europa a partir de poblaciones ancestrales del norte de África o del Próximo Oriente.
La presencia de varias sublíneas A ha permitido incluso plantear que esas entradas pudieron ocurrir en distintos momentos. En una de las reconstrucciones propuestas, la sublínea AI habría sido una de las primeras y habría alcanzado una distribución más amplia; AII habría llegado posteriormente y AIII, actualmente más concentrada hacia el oeste de la Península, podría representar otro episodio de contacto. Se trata de una hipótesis histórica basada en la distribución actual de los haplotipos, no de una secuencia de acontecimientos que podamos considerar demostrada de forma directa.
También se ha planteado que griegos, romanos o poblaciones procedentes del norte de África pudieron transportar colmenas durante periodos históricos. Sin embargo, la gran diversidad de linajes A, su distribución geográfica y los análisis genéticos posteriores indican que esos movimientos humanos no explican por sí solos el patrón actual. El contacto entre las poblaciones de ambos lados del Mediterráneo parece ser mucho más antiguo.
El ADN nuclear cuenta otra parte de la historia
Si miramos solo las mitocondrias, podría parecer que una gran parte de las abejas ibéricas son simplemente abejas africanas establecidas en Europa. Pero el genoma nuclear muestra algo diferente. Los estudios recientes identifican una población ibérica claramente diferenciada, con un componente genómico propio y una estructura geográfica característica. En el análisis genómico más reciente, la mayoría de los individuos presentaba una fuerte asignación al componente ibérico, mientras que la similitud nuclear directa con las poblaciones norteafricanas utilizadas como referencia era muy baja.
No hay contradicción entre ambos resultados. Una línea mitocondrial puede transmitirse de madre a hija durante muchísimas generaciones. Mientras tanto, el ADN nuclear se recombina en cada generación porque las reinas se aparean con zánganos y sus descendientes vuelven a hacerlo dentro de la población local. Así, una antigua línea materna A puede mantenerse reconocible aunque el resto del genoma haya seguido durante mucho tiempo la historia evolutiva de la población ibérica.
Por eso, encontrar un linaje mitocondrial A en una abeja de Portugal, Andalucía o cualquier otra región ibérica no significa que esa abeja sea africana ni que haya habido una hibridación reciente. Tampoco estamos ante el mismo fenómeno que el de la africanización ocurrido en América, en el que una parte muy importante del genoma nuclear procede de Apis mellifera scutellata. En A. m. iberiensis, la señal africana está relacionada principalmente con una historia mucho más antigua de contacto con poblaciones del norte de África, entre ellas las asociadas con A. m. intermissa y A. m. sahariensis.
Así, preguntarse si la abeja ibérica es “africana” o “europea” plantea una falsa dicotomía. Apis mellifera iberiensis es una subespecie propia de la Península Ibérica, originada a lo largo de una historia evolutiva en la que participaron poblaciones ancestrales de distintos orígenes. El ADN mitocondrial conserva parte de esa historia materna, mientras que el ADN nuclear refleja la identidad genética que las poblaciones ibéricas han desarrollado a lo largo del tiempo.
Y esa historia no solo ha generado diversidad. Al vivir durante generaciones en ambientes muy diferentes en la Península, algunas de esas variantes genéticas han estado sometidas a presiones de selección distintas. La siguiente pregunta es, entonces, qué significa realmente decir que una población está adaptada a su ambiente.
Adaptación local: qué significa realmente
Hablar de adaptación local no implica afirmar que Apis mellifera iberiensis sea mejor que otras abejas. Significa que, a lo largo de muchas generaciones, determinadas variantes genéticas pueden haber sido favorecidas porque funcionaban mejor en las condiciones ambientales en las que vivía una población. Una variante que resulta ventajosa en un ambiente no tiene necesariamente el mismo efecto en otro.
Esta distinción es especialmente importante en la Península Ibérica porque no existe un único “clima ibérico”. Las poblaciones de A. m. iberiensis ocupan ambientes que van desde regiones oceánicas húmedas del noroeste hasta zonas semiáridas del sureste. En uno de los estudios genómicos más completos realizados sobre la subespecie, la precipitación media anual en las regiones muestreadas variaba de aproximadamente 1.336 mm en el noroeste a 285 mm en el sureste. Con esas diferencias cambian igualmente la vegetación, las épocas de floración y la disponibilidad de néctar y polen a lo largo del año.
Las señales de adaptación pueden verse en el genoma
Una primera investigación sobre poblaciones ibéricas ya había identificado variantes genéticas asociadas a condiciones ambientales. Sin embargo, la evidencia aumentó considerablemente cuando, en 2018, se secuenciaron 87 genomas completos de A. m. iberiensis procedentes de 16 localidades distribuidas por la Península. Después del filtrado, los investigadores analizaron cerca de 1,29 millones de puntos variables del ADN y buscaron cuáles presentaban patrones compatibles con la selección natural, es decir, señales de que determinadas variantes podían haber aumentado o disminuido de frecuencia a lo largo de generaciones debido a su relación con las condiciones ambientales.
El análisis identificó 670 variantes candidatas, muchas de ellas asociadas a diferencias en la precipitación, la longitud y la latitud. Esas variantes estaban próximas o dentro de 140 genes relacionados con funciones potencialmente importantes para la supervivencia y el funcionamiento de las abejas, entre ellas la reproducción, la inmunidad, el olfato, el metabolismo de lípidos y la regulación del reloj circadiano.
Esto no significa que los investigadores hayan descubierto, por ejemplo, “el gen de la resistencia a la sequía” de la abeja ibérica. Lo que encontraron fueron señales de que determinadas variantes cambian de frecuencia en función de las condiciones ambientales y presentan patrones compatibles con haber sido sometidas a selección natural.
La precipitación es un buen ejemplo de esa cautela. Fue una de las variables que más frecuencia presentó en las asociaciones genéticas, especialmente la precipitación de determinados meses. Pero la lluvia está relacionada, a su vez, con la temperatura, la insolación, la vegetación y la disponibilidad de alimento. Por eso no sabemos si actúa directamente sobre una determinada variante o si lo hace indirectamente al modificar las floraciones, las posibilidades de pecoreo, el crecimiento de la colonia o las condiciones para la reproducción.
Adaptarse puede significar responder de manera diferente al mismo ambiente
Algunos de los genes candidatos estaban relacionados con el olfato y con el reloj circadiano. Ambas funciones pueden ser relevantes para una colonia porque las abejas necesitan detectar y aprender dónde se encuentran los recursos y sincronizar su actividad con los momentos del día y de la temporada en que estos están disponibles.
Sin embargo, aquí vuelve a ser importante separar una señal genética de un efecto demostrado. Que aparezcan genes relacionados con el olfato entre los candidatos a selección natural no demuestra que una población ibérica tenga mejor olfato, del mismo modo que encontrar genes relacionados con la inmunidad no demuestra que sea más resistente a una enfermedad concreta. Esos resultados identifican procesos biológicos que podrían estar participando en la adaptación y que requieren investigaciones adicionales para conocer sus efectos en la colonia.
Otra parte interesante del resultado fue que más del 88 % de las variantes candidatas se encontraban fuera de las regiones que codifican directamente proteínas, aunque muchas estaban próximas a genes o regiones reguladoras. Esto sugiere que una parte de la adaptación podría depender no solo de cambios en las proteínas, sino también de diferencias en cuándo, dónde o cuánto se expresan determinados genes.
Los estudios más recientes siguen encontrando señales propias de las poblaciones ibéricas
La genómica más reciente refuerza esta interpretación. Un estudio publicado en 2025 comparó poblaciones ibéricas e italianas a partir de genomas completos y volvió a detectar múltiples señales compatibles con selección natural. En las abejas ibéricas, se detectaron 176 genes candidatos mediante más de un método. Entre las funciones enriquecidas, aparecieron procesos relacionados con la señalización neuronal, la respuesta a estímulos, la comunicación celular y distintos tipos de receptores y canales iónicos.
La comparación resulta especialmente interesante porque 54 genes contenían SNPs (polimorfismos de un solo nucleótido) con señales de selección natural tanto en las poblaciones ibéricas como en las italianas. Sin embargo, esto no significa necesariamente que en ambas poblaciones estuvieran siendo favorecidos los mismos SNP ni los mismos alelos. Esto indica que algunas respuestas evolutivas pueden compartirse entre distintas poblaciones de Apis mellifera, mientras que otras señales reflejan historias y condiciones ambientales distintas.
Por tanto, no necesitamos imaginar una colección de “genes exclusivos de la abeja ibérica” para justificar la adaptación local. Lo importante es que las frecuencias y combinaciones de variantes que conforman una población han sido moldeadas por su propia historia y por los ambientes en los que ha vivido.
Lo que ocurre en otras poblaciones de abejas ayuda a entender por qué importa
Un gran experimento coordinado por COLOSS (Prevention of Honey Bee Colony Losses) permite situar estos resultados genómicos en su contexto. Entre 2009 y 2012 se compararon en Europa 597 colonias pertenecientes a cinco subespecies y procedentes de 16 orígenes genéticos diferentes, manteniendo en cada región abejas locales junto con material de otras zonas. A. m. iberiensis no formó parte del experimento, por lo que sus resultados no pueden utilizarse como prueba directa de lo que ocurre con la abeja ibérica.
Aun así, el resultado muestra claramente por qué la interacción entre genética y ambiente importa en Apis mellifera. En promedio, las colonias con reinas de origen local sobrevivieron 83 días más que las de origen no local. La supervivencia estuvo fuertemente condicionada por el apiario y, en menor medida, por el origen genético y el de las reinas.
Eso no significa que cualquier colonia local sea necesariamente mejor que cualquier colonia introducida. Significa que el desempeño de un genotipo depende, en parte, del ambiente en el que se encuentra. Un material que funciona muy bien en una región puede no conservar la misma ventaja cuando cambia el clima, la disponibilidad de alimento, la presión sanitaria o la duración de la temporada.
No existe una única adaptación “ibérica”
Esta evidencia cambia la manera de hablar de A. m. iberiensis. Sería demasiado simple afirmar que “la abeja ibérica está adaptada al clima de la Península”, porque la Península alberga ambientes muy diversos y las poblaciones ibéricas presentan una estructura genética propia.
Lo que podemos afirmar con mayor precisión es que dentro de A. m. iberiensis existen señales de selección asociadas a diferentes condiciones ambientales, y algunas de esas señales afectan a genes vinculados con funciones importantes para el funcionamiento de las abejas.
Esta distinción tiene una consecuencia importante para la conservación. Si una población ha acumulado, durante muchas generaciones, variantes y combinaciones genéticas favorecidas bajo determinadas condiciones, sustituirla progresivamente por material de otros orígenes puede hacer que parte de esa diversidad disminuya antes incluso de que sepamos exactamente qué función cumple.
Conservar A. m. iberiensis, por tanto, no implica asumir que toda abeja local sea superior ni intentar mantener una población genéticamente inmóvil. Significa conservar una diversidad sobre la que la selección natural ha actuado durante muchas generaciones y que puede seguir siendo importante para la capacidad de las poblaciones de responder a sus ambientes.
Pero encontrar señales de adaptación en el ADN todavía no nos dice cómo se comportará una colonia en el apiario. Para saberlo, debemos pasar de los genes a los rasgos que el apicultor observa directamente: defensividad, enjambrazón, producción, desarrollo de la colonia y otras características que tradicionalmente se atribuyen a la abeja ibérica.
¿Qué características apícolas tiene realmente?
Cuando se describe una subespecie de abeja, es frecuente encontrar listas de características: más defensiva, más enjambradora, más productiva o más rústica. El problema es que muchos de esos rasgos dependen de numerosos genes y están fuertemente influidos por el ambiente, el estado de la colonia y el manejo. Por eso, pertenecer a Apis mellifera iberiensis no permite predecir de antemano el comportamiento de cada colonia.
La propia diversidad que hemos visto en las secciones anteriores ayuda a entenderlo. Las poblaciones ibéricas no son genéticamente uniformes y habitan ambientes muy distintos. Un estudio realizado con colonias de A. m. iberiensis en Burgos, Lousã e Idanha-a-Nova mostró, por ejemplo, que el desarrollo anual de las colonias variaba considerablemente entre localidades. El máximo de población se alcanzó aproximadamente en abril en Idanha-a-Nova, en mayo en Lousã y en julio en Burgos.
Esto significa que características como el tamaño de la población, la cantidad de cría o el momento de mayor desarrollo no pueden atribuirse únicamente a la subespecie. La disponibilidad de alimento, el clima y la duración de la temporada modifican profundamente lo que el apicultor termina observando.
Defensividad
La abeja ibérica ha sido descrita históricamente como relativamente defensiva y nerviosa durante el manejo. Algunas observaciones modernas son compatibles con esa descripción. En un experimento en el que se mantuvieron seis subespecies europeas en un mismo apiario en Alemania, los investigadores señalaron que las colonias de A. m. iberiensis procedentes de Portugal mostraban una mayor defensividad que las de A. m. carnica. Sin embargo, el objetivo principal de aquel estudio era analizar el aprendizaje olfativo y no realizar una comparación específica y cuantitativa de la defensividad entre subespecies.
Por tanto, la evidencia permite afirmar que algunas poblaciones o líneas de A. m. iberiensis pueden presentar una defensividad elevada, pero no que todas las colonias ibéricas sean agresivas. Existe variación entre colonias y ese rasgo puede responder a la selección. De hecho, los programas actuales de mejora de la abeja ibérica evalúan expresamente la agresividad y la calma en el cuadro, precisamente porque existe variación dentro de la población con la que se puede trabajar.
Tendencia a enjambrar
La elevada tendencia a la enjambrazón figura con frecuencia entre las características atribuidas a la abeja ibérica. Además, diferentes programas de mejora la incluyen como un rasgo que interesa controlar o reducir.
Sin embargo, no disponemos de buenos ensayos modernos y amplios que permitan afirmar que A. m. iberiensis enjambra sistemáticamente más que A. m. ligustica, A. m. carnica, Buckfast u otras poblaciones. La enjambrazón está influida por la genética, pero también por la edad de la reina, el crecimiento de la colonia, el espacio disponible, la disponibilidad de recursos y las condiciones ambientales.
Por eso es más preciso considerar la enjambrazón un rasgo variable dentro de las poblaciones ibéricas y un objetivo posible de selección, en lugar de presentarla como una propiedad fija de toda la subespecie.
Producción de miel
Tampoco existe una cifra que permita clasificar a la abeja ibérica como de producción “alta”, “media” o “baja”. La cantidad de miel producida depende de la genética de la colonia, pero también de la floración disponible, el clima, la fuerza de la colonia, el manejo y la coincidencia entre el desarrollo poblacional y el flujo de néctar.
Un experimento realizado en Portugal ayuda a entenderlo. Colonias procedentes del norte y del sur del país se mantuvieron tanto en su región de origen como en la otra región. Al comparar la producción de miel, en algunas pruebas las colonias locales produjeron más que las trasladadas desde otra zona. Esto indica que el rendimiento no depende únicamente de la genética de la colonia, sino también del ambiente en el que dicha genética se expresa. Estos resultados provienen de trabajos académicos y comunicaciones de ese experimento, por lo que deben interpretarse con cautela, pero se alinean con la evidencia genómica de adaptación local que vimos en la sección anterior.
La consecuencia práctica es importante: no tiene mucho sentido asignar una productividad fija a toda A. m. iberiensis. Incluso dentro de la propia subespecie, el rendimiento puede variar cuando una población se utiliza fuera del ambiente en el que se desarrolló.
Desarrollo de la colonia
Algo parecido ocurre con la prolificidad. A veces se describe a la abeja ibérica como muy prolífica y, en otras ocasiones, como una abeja capaz de ajustar bien el tamaño de la colonia a los recursos disponibles.
La evidencia disponible muestra, sobre todo, plasticidad y una fuerte dependencia del ambiente. En el estudio realizado en Burgos y en Portugal, las colonias alcanzaron máximos de desarrollo en momentos distintos y respondieron de manera diferente a los recursos disponibles en cada paisaje.
Por eso no hablaría de un único ciclo de desarrollo característico de toda la subespecie. Una colonia ibérica mantenida en Galicia, País Vasco, Andalucía o en el sur de Portugal no necesariamente seguirá el mismo calendario de crecimiento, aunque pertenezca a la misma subespecie.
Producción de propóleo
Otra característica que suele atribuirse a A. m. iberiensis es una elevada producción de propóleo. Sin embargo, la evidencia encontrada no permite sostener esa comparación frente a otras subespecies.
En un estudio portugués realizado con 20 colonias de A. m. iberiensis, la producción media durante 60 días fue de aproximadamente 65 g por colonia, con una variación considerable entre las colonias. Los propios autores señalaron que esos valores se encontraban dentro de los previamente descritos para abejas melíferas y no demostraron que la abeja ibérica produjera más propóleo que otras poblaciones.
Por tanto, sabemos que existe variación en la producción de propóleo dentro de A. m. iberiensis, pero no podemos convertir esa variación en una característica distintiva general de la subespecie.
Qué podemos afirmar y qué conviene evitar
| Rasgo | Qué permite afirmar la evidencia | Qué conviene evitar |
|---|---|---|
| Defensividad | Algunas poblaciones o líneas pueden ser relativamente defensivas y existe variación entre colonias | “Todas las ibéricas son agresivas” |
| Enjambrazón | Es un rasgo variable y utilizado como criterio de selección | “La ibérica enjambra más que otras subespecies” |
| Producción de miel | Depende de la interacción entre genética y ambiente | “Produce más” o “produce menos” que otras abejas de forma general |
| Desarrollo de la colonia | Cambia con el clima, los recursos y el origen de la población | “La ibérica siempre es muy prolífica” |
| Propóleo | Existe producción y variación entre colonias | “Produce mucho más propóleo que otras subespecies” |
| Calma sobre el cuadro | Se evalúa en programas de selección y presenta variación | “Toda ibérica es nerviosa sobre los cuadros” |
Esta diferencia entre las tendencias poblacionales y las características fijas es importante. Una subespecie describe una población con una historia genética compartida; no determina de antemano cómo se comportará cada una de sus colonias.
Además, muchos de estos rasgos pueden modificarse mediante la selección. Que programas de mejora de A. m. iberiensis evalúen simultáneamente defensividad, calma sobre el cuadro, enjambrazón, producción o comportamiento higiénico demuestra precisamente que existe variabilidad dentro de la población. Si todas las colonias presentaran el mismo comportamiento, habría poco margen para seleccionar unas frente a otras.
Esto nos lleva a otra característica que suele atribuirse a la abeja ibérica con demasiada facilidad: su supuesta resistencia a las enfermedades y a Varroa destructor. En ese caso, conviene separar, aún con mayor cuidado, la adaptación, el comportamiento higiénico, la resistencia genética y el estado sanitario de una colonia.
¿Es la abeja ibérica más resistente a enfermedades y a Varroa?
La adaptación local que vimos en la sección anterior no implica necesariamente resistencia a enfermedades ni a parásitos. Una población puede estar bien adaptada al clima, a las floraciones o al ciclo anual de una región y, al mismo tiempo, ser vulnerable a un organismo que apareció posteriormente o ejerce una presión distinta.
Conviene además distinguir dos conceptos. Una colonia resistente consigue limitar el desarrollo del parásito o del patógeno. Una colonia tolerante puede soportar una determinada carga y sufrir menos daño que otras colonias sometidas a infecciones o infestaciones similares. Que una colonia sobreviva tampoco permite saber, sin estudiarla, cuál de estos mecanismos está actuando.
Varroa destructor afecta claramente a A. m. iberiensis
La evidencia disponible no permite describir a Apis mellifera iberiensis como una subespecie generalmente resistente a Varroa destructor. El ácaro puede multiplicarse en sus colonias y afectar de manera importante su desarrollo, además de favorecer la transmisión y la amplificación de virus.
Un estudio publicado en 2026 con colonias de A. m. iberiensis en Guadalajara - España permite verlo con bastante claridad. Las colonias en las que se redujo, mediante tratamientos, la población de Varroa durante la primavera llegaron al final del verano con un 42,2 % más de abejas adultas que las colonias manejadas únicamente con el control otoñal utilizado como comparación. Además, presentaban una carga de ácaros unas 25 veces menor antes del tratamiento de otoño.
Este resultado no permite generalizar el comportamiento de todas las poblaciones ibéricas, pero sí demuestra que, en las colonias estudiadas, la presión de Varroa limitaba el desarrollo de las colonias y que reducirla produjo una mejora importante en su población adulta.Tener un linaje materno A tampoco implica mayor resistencia
Podría parecer razonable pensar que las abejas ibéricas del linaje mitocondrial A deberían soportar mejor Varroa debido a su antigua relación con poblaciones africanas. Los datos disponibles no respaldan esa conclusión.
En un estudio realizado con 228 colonias de 41 provincias españolas, muestreadas en 2006 y 2010, no se encontró una relación significativa entre pertenecer al linaje mitocondrial A o M y la presencia de Varroa destructor. Tampoco se encontró esa asociación para el microsporidio conocido durante años como Nosema ceranae.
Este resultado vuelve a mostrar por qué un linaje mitocondrial no describe el funcionamiento completo de una colonia. Una abeja puede portar una línea materna A sin compartir el conjunto de características de una población africana actual.
Nosema ceranae ahora se llama Vairimorpha ceranae
La especie conocida tradicionalmente por los apicultores como Nosema ceranae fue trasladada en 2020 al género Vairimorpha a partir de análisis filogenéticos, por lo que su nombre actualmente aceptado es Vairimorpha ceranae. El nombre anterior continúa siendo muy utilizado en la apicultura y en buena parte de la literatura publicada. Un análisis genómico publicado en 2025 volvió a respaldar su posición dentro de Vairimorpha.
Tampoco encontramos evidencia para considerar a A. m. iberiensis resistente a este microorganismo. En un estudio realizado con 50 colonias ibéricas infectadas naturalmente, principalmente por V. ceranae, la infección se asoció, bajo las condiciones del experimento, con reducciones significativas en el tamaño de la colonia, la cantidad de cría y la producción de miel.
Por tanto, tampoco sería correcto utilizar la rusticidad o la adaptación local de la abeja ibérica como sinónimos de resistencia sanitaria.
Eso no significa que todas las colonias respondan igual a Varroa
Dentro de A. m. iberiensis existe variación y se han encontrado colonias capaces de mantener niveles de parasitación compatibles con una supervivencia prolongada sin tratamiento. En una experiencia de selección desarrollada por la Universidad de Córdoba, solo alrededor del 13 % de las colonias iniciales sobrevivió al primer proceso sin tratamiento frente a Varroa. A partir de esas supervivientes fue posible continuar manteniendo y seleccionando un núcleo de colonias durante varios años. Algunas presentaban cargas relativamente bajas de ácaros y una menor reproducción de Varroa.
Ese resultado es importante precisamente porque muestra las dos caras del problema. La mayoría de las colonias iniciales no superó aquella presión de selección, por lo que no podemos hablar de resistencia general de iberiensis. Pero algunas colonias sí respondieron de manera diferente, lo que demuestra que dentro de la población existe variabilidad que puede aprovecharse mediante la selección.
Hasta ahora, sin embargo, no encontramos evidencia sólida suficiente para afirmar que el comportamiento VSH sea una característica general de A. m. iberiensis. Un estudio europeo sobre la supresión de la reproducción de Varroa incluyó colonias ibéricas portuguesas, pero fueron solo siete y ninguna alcanzó el número mínimo de celdas infestadas necesario para estimar con fiabilidad ese rasgo.
Por eso sería prematuro atribuir a la subespecie un mecanismo específico de resistencia. Lo que podemos afirmar es que existen diferencias entre colonias en su capacidad para limitar o tolerar la población de Varroa, y que esa variación puede constituir materia prima para la selección.
En consecuencia, conservar la diversidad genética dentro de A. m. iberiensis también puede ser importante desde el punto de vista sanitario, pero por una razón distinta de la de afirmar que “la abeja ibérica es resistente”. Conservar la diversidad mantiene variantes sobre las que pueden actuar tanto la selección natural como la selección realizada por el apicultor; no garantiza que todas las colonias posean resistencia a una enfermedad determinada.
Conservar y mejorar la abeja ibérica: introgresión, diversidad y selección
Después de conocer la diversidad genética de Apis mellifera iberiensis, la conservación deja de ser simplemente una cuestión de mantener una abeja de un aspecto determinado. El objetivo es más amplio: conservar una población que todavía mantiene una estructura genética propia, una elevada diversidad interna y variantes que han evolucionado bajo distintas condiciones de la Península Ibérica.
Esto no significa impedir cualquier cambio genético. Las poblaciones cambian continuamente y la selección forma parte de ese proceso. La cuestión es evitar dos pérdidas distintas: que la genética propia de la población sea sustituida progresivamente por material externo y que, al mismo tiempo, la propia selección reduzca en exceso la diversidad que queremos conservar.
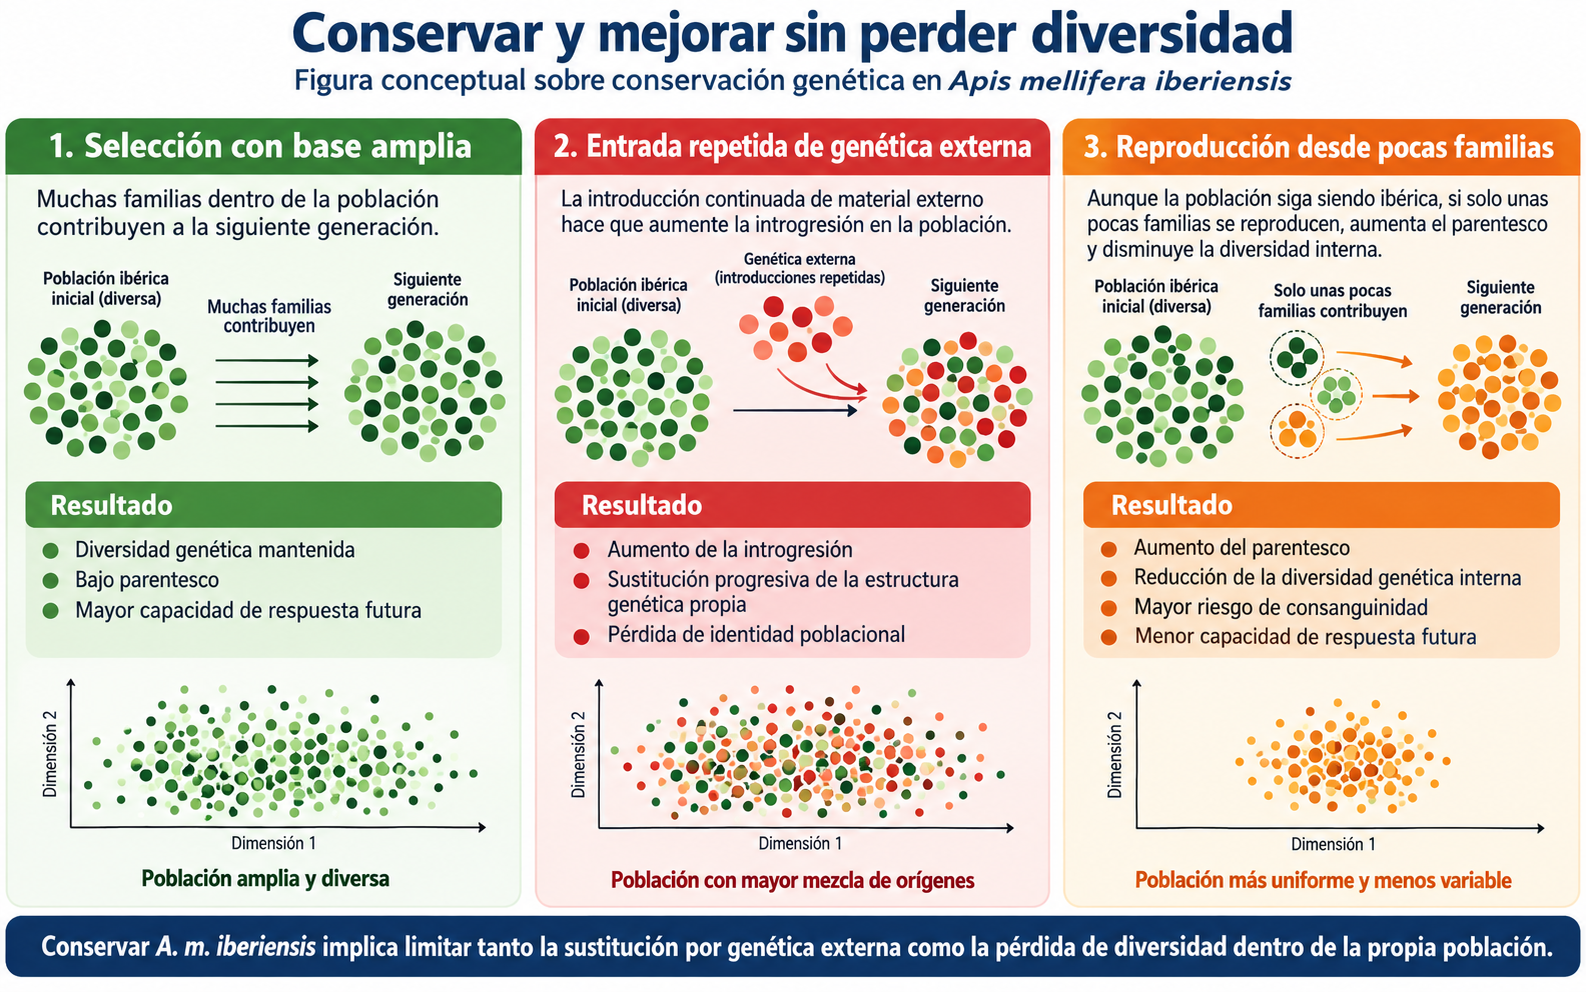 Figura 2. La conservación de Apis mellifera iberiensis requiere limitar tanto la introgresión de genética externa como la pérdida de diversidad interna derivada de la reproducción a partir de pocas familias.
La introgresión reciente en la Península parece todavía limitada
La introducción de reinas de A. m. ligustica, A. m. carnica, Buckfast y otros materiales comerciales permite que su genética se integre en las poblaciones locales cuando sus descendientes se reproducen posteriormente con abejas ibéricas.
Sin embargo, los estudios genómicos disponibles no muestran que este proceso haya sustituido de forma generalizada a A. m. iberiensis en la Península. En el análisis genómico más reciente, la ancestralidad procedente de otras poblaciones fue relativamente baja en las muestras ibéricas y la señal atribuible al linaje C —al que pertenecen ligustica y carnica— fue muy pequeña a escala peninsular.
Por tanto, no parece correcto afirmar que la abeja ibérica esté actualmente profundamente hibridada en toda su área de distribución. La evidencia indica algo más interesante: gran parte de su estructura genética histórica continúa siendo reconocible a pesar del movimiento de colmenas, de la trashumancia y de la introducción de material reproductivo extranjero.
Esto coloca la conservación en una situación favorable. No se trata de reconstruir una población que ya ha desaparecido, sino de evitar perder una diversidad que todavía está presente.
Las Azores muestran lo que puede ocurrir cuando aumenta la entrada de genética externa
Las poblaciones de las Azores ofrecen un ejemplo especialmente útil. Su origen está estrechamente relacionado con las abejas ibéricas, pero entre 1985 y 1989 se implementó un programa de introducción de abejas del linaje C para mejorar las características productivas y de comportamiento.
Décadas después, un estudio genético de 474 colonias encontró resultados muy distintos entre las islas. En Santa Maria prácticamente no se detectó introgresión nuclear del linaje C y, en São Miguel, la media fue de alrededor del 3,4 %. En cambio, alcanzó aproximadamente el 39 % en Graciosa, el 26 % en Pico y el 22 % en Faial.
El interés de este resultado no está solamente en las cifras. Muestra que una misma introducción de material externo puede tener consecuencias muy diferentes según la población a la que llega. El tamaño de esa población, el número de introducciones, los zánganos disponibles, el movimiento posterior de colonias, la deriva genética y la selección pueden modificar el destino de esa genética en las generaciones siguientes.
La introgresión, por tanto, no es un proceso que avance siempre de la misma manera ni una categoría simple de “híbrida” o “no híbrida”. Puede permanecer baja, aumentar o incluso reducirse posteriormente según lo que ocurra en la población.
Conservar no significa buscar una población genéticamente uniforme
Esta diferencia es importante porque con frecuencia la conservación se presenta como una búsqueda de “pureza genética”.
Pero A. m. iberiensis nunca ha sido una población uniforme. Ya vimos que existen diferencias genéticas entre regiones, entre los linajes maternos A y M, adaptaciones locales y una considerable variación entre colonias.
Por eso, conservar la abeja ibérica no consiste en lograr que todas las colonias sean genéticamente iguales. Precisamente, una parte de lo que queremos conservar es esa variabilidad.
Los análisis genéticos pueden estimar cuánta ancestralidad de otras poblaciones se observa en una muestra, pero el punto de corte para considerar que existe una introgresión relevante depende del objetivo del programa. Un porcentaje determinado puede utilizarse como criterio práctico de conservación, pero no existe una frontera biológica universal que divida automáticamente a las abejas en “puras” e “híbridas”.
La pregunta importante es otra: ¿la entrada continua de material externo está empezando a sustituir la estructura y la diversidad propias de la población que queremos conservar?
La diversidad interna puede perderse incluso sin introducir una sola reina extranjera
Existe otra forma de pérdida de diversidad que recibe mucha menos atención.
Imaginemos una población formada exclusivamente por A. m. iberiensis. Si durante muchas generaciones casi todas las nuevas reinas proceden de unas pocas colonias consideradas excepcionales y gran parte de los zánganos reproductores pertenece también a esas mismas familias, la población puede seguir siendo completamente ibérica en cuanto a su ancestralidad y, sin embargo, haber perdido una parte importante de la diversidad que contenía anteriormente.
Por eso debemos distinguir dos objetivos:
conservar la identidad genética de la población
y
conservar una diversidad suficiente en esa población.
Evitar la entrada de genética externa ayuda al primero. Mantener un número amplio de familias reproductoras ayuda al segundo.
Cuando la reproducción se concentra en exceso, aumenta el parentesco entre individuos y disminuye la probabilidad de conservar variantes poco frecuentes. Algunas pueden parecer irrelevantes hoy y resultar importantes en el futuro ante nuevos patógenos, cambios climáticos, modificaciones en las floraciones u otras presiones que aún no podemos anticipar.
Por eso, conservar la diversidad genética implica también conservar la capacidad de respuesta futura.
En las abejas, perder diversidad tiene además una consecuencia muy concreta
El sistema de determinación sexual de Apis mellifera hace especialmente importante mantener la diversidad del gen csd.
Normalmente, un huevo fecundado que recibe dos alelos diferentes de csd se desarrolla como hembra. Cuando aumenta el parentesco y reina y zángano comparten con mayor frecuencia el mismo alelo, pueden producirse machos diploides. Las obreras suelen eliminarlos durante el desarrollo y el resultado puede observarse como una reducción de la viabilidad de la cría.
Por eso, incluso un programa formado exclusivamente por A. m. iberiensis puede generar problemas si reduce demasiado el número de familias reproductoras.
Este ejemplo muestra con claridad que conservar no significa únicamente impedir la entrada de genes externos; también implica evitar que desaparezca demasiada variabilidad desde dentro.
La población ibérica parte actualmente de una posición especialmente valiosa
La comparación genómica reciente entre poblaciones ibéricas e italianas aporta otro argumento importante a favor de la conservación.
En las muestras estudiadas, las abejas ibéricas presentaron una mayor diversidad nucleotídica, tanto nuclear como mitocondrial, y un parentesco genómico considerablemente menor que el de las poblaciones italianas analizadas. Además, las reconstrucciones demográficas han indicado históricamente un tamaño efectivo de la población mayor en Iberia.
El tamaño efectivo no se corresponde simplemente con el número de colmenas existentes. Representa, de forma simplificada, cuántos individuos contribuyen genéticamente a las generaciones siguientes. Una población puede contener muchísimas colonias y tener, sin embargo, un tamaño efectivo reducido si gran parte de las nuevas reinas y zánganos procede repetidamente de pocas familias.
La comparación con A. m. ligustica no demuestra que la abeja ibérica sea superior. Lo que demuestra es algo directamente relacionado con la conservación: las poblaciones ibéricas estudiadas mantienen actualmente un acervo genético muy diverso, relativamente poco emparentado y con una base reproductiva históricamente amplia.
Eso es precisamente lo que podemos perder si reducimos en exceso el número de reproductores.
Conservar no significa dejar de seleccionar
Aquí se presenta una consecuencia importante para la apicultura.
Una población local solo será sostenible a largo plazo si los apicultores pueden trabajar de manera satisfactoria con ella. Por eso, la conservación y la mejora genética no tienen por qué ser objetivos opuestos.
Dentro de A. m. iberiensis existe variación en defensividad, enjambrazón, producción, comportamiento sanitario y otros rasgos. Esa variación permite seleccionar colonias con mejores características sin necesidad de sustituir la población por otra subespecie.
El problema aparece cuando mejorar significa multiplicar de manera desproporcionada unas pocas familias consideradas superiores.
Una alternativa compatible con la conservación es una selección masal de base amplia por desempeño general. En lugar de buscar una única característica y concentrar casi toda la reproducción en unas pocas colonias extraordinarias, se evalúa el funcionamiento general de muchas colonias y se mantiene como reproductoras un grupo suficientemente amplio de aquellas que presentan un buen equilibrio entre los rasgos importantes.
Esto puede incluso llevar a una estrategia en la que sea tan importante descartar las colonias claramente deficientes como identificar unas pocas supuestamente excepcionales. Un estudio publicado en 2026 sobre varios años de selección masal en abejas planteó precisamente la posibilidad de trabajar mediante selección por exclusión: retirar del proceso reproductivo el material de peor desempeño y conservar una base reproductiva más amplia entre las colonias satisfactorias.
Esta estrategia no garantiza automáticamente la conservación de la diversidad. Si finalmente se utilizan muy pocas madres, también puede producirse un estrechamiento genético. Pero el principio es útil: mejorar una población no exige reducirla a unas pocas familias élite.
Y la mitad paterna de la población también cuenta
Elegir muchas reinas madres no resuelve el problema si la siguiente generación recibe la mayor parte de su aporte paterno de unas pocas familias.
Las reinas se aparean con numerosos zánganos, que pueden provenir de colonias situadas a varios kilómetros de distancia. Por eso, la genética que circula en una población depende tanto de las reinas que se reproducen como de las colonias que producen los zánganos que consiguen aparearse con ellas.
Este punto resulta fundamental para cualquier programa de conservación o mejora de A. m. iberiensis. Distribuir reinas seleccionadas puede modificar una parte de la población, pero si esas reinas se fecundan en áreas donde abundan zánganos procedentes de otras subespecies o líneas genéticas externas, su descendencia incorporará parte de esa genética.
Distribuir reinas seleccionadas puede modificar una parte de la población, pero si esas reinas se fecundan en áreas donde abundan zánganos procedentes de otras subespecies o líneas genéticas externas, su descendencia incorporará parte de esa genética.
El problema opuesto también existe dentro de la propia población ibérica: si una gran proporción de los apareamientos depende de zánganos procedentes de muy pocas familias de A. m. iberiensis, puede aumentar el parentesco y reducir la diversidad genética, aunque se utilicen muchas reinas madres y no se introduzca material externo.
Por eso, una estrategia de mejora poblacional debería considerar la amplitud de la base materna y paterna, no únicamente qué reina encabeza cada colonia.
Mejorar sin sustituir ni empobrecer
Todo esto cambia la manera de entender la conservación de la abeja ibérica.
El objetivo no tiene que ser mantener una población inmóvil ni intentar recuperar una supuesta abeja genéticamente uniforme que nunca existió. Tampoco significa rechazar la selección.
Significa mantener una población suficientemente amplia y diversa para que pueda seguir evolucionando y mejorando, evitando, al mismo tiempo, que la entrada continua de material externo sustituya progresivamente su estructura genética o que una selección demasiado estrecha elimine gran parte de su variabilidad interna.
Hoy tenemos una ventaja importante: los estudios genómicos indican que Apis mellifera iberiensis todavía conserva una elevada diversidad, un parentesco relativamente bajo y una escasa introgresión reciente a escala peninsular.
Por eso, conservarla no consiste solamente en proteger lo que fue. Consiste en mantener las opciones genéticas con las que esta población podrá responder a lo que venga después.
Y desde la selección apícola, el objetivo puede formularse de manera igualmente sencilla: mejorar el desempeño general de la población sin sustituirla por otra ni reducirla a unas pocas familias reproductoras.
Preguntas frecuentes sobre la abeja negra ibérica
¿Apis mellifera iberica y Apis mellifera iberiensis son lo mismo?
Sí. Ambos nombres se han utilizado para referirse a la abeja melífera propia de la Península Ibérica. Apis mellifera iberiensis es el nombre taxonómico utilizado actualmente, mientras que Apis mellifera iberica todavía aparece en publicaciones antiguas y en algunos textos divulgativos.
¿La abeja negra ibérica tiene que ser completamente negra?
No. Dentro de A. m. iberiensis existe variación natural en la pigmentación y algunas abejas pueden presentar zonas o bandas amarillentas. Los estudios que han comparado el color con la composición genética muestran que la proporción de amarillo no permite determinar el grado de introgresión. Puede haber abejas con amarillo con muy poca introgresión y abejas completamente negras que sí la presenten.
Por eso, el color sirve para describir una abeja, pero no para certificar su composición genética.
¿Toda abeja negra que vemos en la Península Ibérica es Apis mellifera iberiensis?
No. “Abeja negra” es un nombre común que puede aplicarse a insectos diferentes. En la Península vive, por ejemplo, Xylocopa violacea, una gran abeja carpintera de cuerpo negro y alas con reflejos violáceos que no pertenece siquiera al mismo género que la abeja melífera.
Cuando hablamos de abeja negra ibérica en apicultura, nos referimos específicamente a Apis mellifera iberiensis.
¿La abeja ibérica es africana o europea?
Apis mellifera iberiensis es una subespecie propia de la Península Ibérica. Su historia genética, sin embargo, conserva señales de antiguos contactos entre poblaciones europeas y norteafricanas.
Dentro de iberiensis existen líneas maternas de los linajes mitocondriales A y M, pero eso no significa que las abejas del linaje A sean actualmente “abejas africanas”. El genoma nuclear muestra una identidad ibérica diferenciada y la señal africana detectada en estas poblaciones parece corresponder principalmente a una historia evolutiva muy antigua.
¿La abeja ibérica es más agresiva que otras abejas?
Algunas poblaciones y líneas de A. m. iberiensis han sido descritas como relativamente defensivas, y existen observaciones modernas que son compatibles con esa característica. Sin embargo, la defensividad varía considerablemente entre colonias y no puede considerarse una propiedad fija de toda la subespecie.
Precisamente esa variación permite seleccionar colonias más mansas dentro de la propia población ibérica sin necesidad de sustituirlas por otra subespecie.
¿La abeja ibérica es resistente a Varroa destructor?
No existe evidencia suficiente para considerar a A. m. iberiensis resistente a Varroa como subespecie. El ácaro puede multiplicarse en sus colonias, favorecer la circulación de virus y afectar de manera importante su desarrollo.
Sí existen diferencias entre colonias y se han encontrado algunos materiales capaces de limitar mejor la población del ácaro o sobrevivir durante más tiempo sin tratamiento. Esa variación puede aprovecharse mediante la selección, pero no debe confundirse con una resistencia generalizada en todas las abejas ibéricas.
¿Es mejor la abeja ibérica que las Buckfast, ligustica o carnica?
No existe una población de abejas que sea universalmente mejor en todos los ambientes y para todos los rasgos. Producción, defensividad, enjambrazón, desarrollo de la colonia y supervivencia dependen tanto de la genética como de las condiciones en las que se mantienen las colonias.
Además, Buckfast no es una subespecie natural, sino un material de cría desarrollado a partir de distintos orígenes genéticos.
El interés en conservar A. m. iberiensis no depende de demostrar que sea superior, sino de preservar una población diversa, con una historia genética propia y señales de adaptación a diferentes ambientes de la Península.
¿Se puede seleccionar Apis mellifera iberiensis sin perder diversidad genética?
Sí, pero importa mucho cómo se organiza la reproducción. Seleccionar dentro de una base amplia de colonias, considerar su desempeño general y mantener numerosos orígenes maternos y paternos permite mejorar la población sin concentrar innecesariamente la genética en unas pocas familias.
El riesgo aparece cuando gran parte de las nuevas reinas o de los zánganos reproductores procede repetidamente de muy pocos linajes. En ese caso, puede aumentar el parentesco y disminuir la diversidad, aunque todo el material continúe perteneciendo a A. m. iberiensis.
Por eso, mejorar y conservar no son objetivos opuestos: el reto es seleccionar sin sustituir ni empobrecer la población.
Conclusión
La abeja negra ibérica, Apis mellifera iberiensis, no se entiende bien ni a partir de una lista fija de características ni observando solo su color. Su identidad se encuentra en una población con una historia evolutiva compleja, una gran diversidad interna y diferencias genéticas entre las regiones de la Península.
Esa diversidad explica por qué, dentro de la misma subespecie, pueden aparecer distintos patrones de pigmentación, linajes maternos A y M, respuestas diferentes al ambiente y una amplia variación en rasgos como defensividad, enjambrazón, productividad o respuesta frente a Varroa. Ninguna de esas características, tomada de forma aislada, define a toda la población.
Los estudios genómicos muestran, además, que A. m. iberiensis conserva actualmente una elevada diversidad genética, un parentesco relativamente bajo y una estructura poblacional propia que todavía no ha sido sustituida de forma generalizada por material externo. Ese patrimonio tiene valor no porque convierta automáticamente a la abeja ibérica en “mejor” que otras poblaciones, sino porque representa una reserva de variación genética sobre la que pueden seguir actuando la selección natural y la selección realizada por los apicultores.
Conservarla tampoco significa mantenerla inmóvil. Es posible seleccionar colonias más productivas, manejables o resistentes dentro de la propia población ibérica. El reto es hacerlo sin concentrar la reproducción en unas pocas familias y sin sustituir progresivamente su diversidad por genética procedente de otros orígenes.
Por eso, conservar Apis mellifera iberiensis no consiste simplemente en conservar una abeja negra. Consiste en mantener una población lo suficientemente diversa como para seguir adaptándose, evolucionando y mejorando en el futuro.
¿Quieres llevar estos principios a la práctica en tu apiario?
Comprender la genética es el primer paso. Lo siguiente es aprender a criar reinas y organizar la reproducción de tus colonias con un criterio claro, seleccionando el material que quieres multiplicar y entendiendo mejor el papel de las reinas y los zánganos en la siguiente generación.
En el Curso de Cría de Reinas de Apicultura Especializada aprenderás el proceso completo para producir tus propias reinas y utilizar la cría como herramienta para mejorar tu apiario.
Fuentes consultadas
- Bojko, J., Becnel, J., Bessette, E., et al. (2025). Nosema or Vairimorpha: Genomic/proteomic support to a complex socio-economic issue rooted in taxonomic change. Journal of Invertebrate Pathology, 212, 108376. doi: 10.1016/j.jip.2025.108376.
- Botías, C., Martín-Hernández, R., Barrios, L., Meana, A., & Higes, M. (2013). Nosema spp. infection and its negative effects on honey bees (Apis mellifera iberiensis) at the colony level. Veterinary Research, 44, 25. doi: 10.1186/1297-9716-44-25.
- Bossuyt, E., Danneels, E., & de Graaf, D. C. (2026). Reconsidering the Selection Strategy in a Flemish Honey Bee Breeding Program: Towards Selection by Exclusion. Insects, 17(7), 689. doi: 10.3390/insects17070689.
- Büchler, R., Costa, C., Hatjina, F., et al. (2014). The influence of genetic origin and its interaction with environmental effects on the survival of Apis mellifera L. colonies in Europe. Journal of Apicultural Research, 53(2), 205–214. doi: 10.3896/IBRA.1.53.2.03.
- Cánovas, F., de la Rúa, P., Serrano, J., & Galián, J. (2008). Geographical patterns of mitochondrial DNA variation in Apis mellifera iberiensis (Hymenoptera: Apidae). Journal of Zoological Systematics and Evolutionary Research, 46, 24–30. doi: 10.1111/j.1439-0469.2007.00435.x.
- Capela, N., Sarmento, A., Simões, S., et al. (2023). Exploring the External Environmental Drivers of Honey Bee Colony Development. Diversity, 15(12), 1188. doi: 10.3390/d15121188.
- Chávez-Galarza, J., Henriques, D., Johnston, J. S., et al. (2013). Signatures of selection in the Iberian honey bee (Apis mellifera iberiensis) revealed by a genome scan analysis of single nucleotide polymorphisms. Molecular Ecology, 22, 5890–5907. doi: 10.1111/mec.12537.
- Chávez-Galarza, J., Henriques, D., Johnston, J. S., Carneiro, M., Rufino, J., Patton, J. C., & Pinto, M. A. (2015). Revisiting the Iberian honey bee (Apis mellifera iberiensis) contact zone: maternal and genome-wide nuclear variations provide support for secondary contact from historical refugia. Molecular Ecology, 24, 2973–2992. doi: 10.1111/mec.13223.
- Chávez-Galarza, J., Garnery, L., Henriques, D., et al. (2017). Mitochondrial DNA variation of Apis mellifera iberiensis: further insights from a large-scale study using sequence data of the tRNAleu-cox2 intergenic region. Apidologie, 48, 533–544. doi: 10.1007/s13592-017-0498-2.
- Engel, M. S. (1999). The Taxonomy of Recent and Fossil Honey Bees (Hymenoptera: Apidae; Apis). Journal of Hymenoptera Research, 8(2), 165–196.
- Henriques, D., Wallberg, A., Chávez-Galarza, J., Johnston, J. S., Webster, M. T., & Pinto, M. A. (2018). Whole genome SNP-associated signatures of local adaptation in honeybees of the Iberian Peninsula. Scientific Reports, 8, 11145. doi: 10.1038/s41598-018-29469-5.
- Henriques, D., Parejo, M., Vignal, A., Wragg, D., & Pinto, M. A. (2018). Developing reduced SNP assays from whole-genome sequence data to estimate introgression in an organism with complex genetic patterns, the Iberian honeybee (Apis mellifera iberiensis). Evolutionary Applications, 11, 1270–1282. doi: 10.1111/eva.12623.
- Henriques, D., Chávez-Galarza, J., Teixeira, J. S. G., et al. (2020). Wing Geometric Morphometrics of Workers and Drones and Single Nucleotide Polymorphisms Provide Similar Genetic Structure in the Iberian Honey Bee (Apis mellifera iberiensis). Insects, 11(2), 89. doi: 10.3390/insects11020089.
- Henriques, D., Lopes, A. R., Ferrari, R., et al. (2020). Can introgression in M-lineage honey bees be detected by abdominal colour patterns? Apidologie, 51, 583–593. doi: 10.1007/s13592-020-00744-7.
- Henriques, D., Lopes, A. R., Low, M., & Pinto, M. A. (2025). Human-mediated introgression and Varroa destructor shaped the genetic structure of honey bee populations in the Azores. Scientific Reports, 15, 25217. doi: 10.1038/s41598-025-08950-y.
- Jara, L., Cepero, A., Garrido-Bailón, E., Martín-Hernández, R., Higes, M., & De la Rúa, P. (2012). Linking evolutionary lineage with parasite and pathogen prevalence in the Iberian honey bee. Journal of Invertebrate Pathology, 110(1), 8–13. doi: 10.1016/j.jip.2012.01.007.
- Kistler, T., Basso, B., & Phocas, F. (2021). A simulation study of a honeybee breeding scheme accounting for polyandry, direct and maternal effects on colony performance. Genetics Selection Evolution, 53, 71. doi: 10.1186/s12711-021-00665-8.
- Lopes, A. R., Neves, C. J., Ventura, P. J. C., et al. (2018). Adaptação local da Abelha Ibérica (Apis mellifera iberiensis): uma experiência de translocação recíproca. V Congresso Ibérico de Apicultura.
- Mondet, F., Parejo, M., Meixner, M. D., et al. (2020). Evaluation of Suppressed Mite Reproduction (SMR) Reveals Potential for Varroa Resistance in European Honey Bees (Apis mellifera L.). Insects, 11(9), 595. doi: 10.3390/insects11090595.
- Pardal, P., Casalta, F., & Godinho, J. (2014). Própolis: avaliação quantitativa da produção de própolis. Revista da Unidade de Investigação do Instituto Politécnico de Santarém, 4(2), 182–191.
- Pérez-Pérez, A., Sagastume, S., Martín-Hernández, R., & Higes, M. (2026). Improving Apis mellifera iberiensis colony development through a combined spring oxalic acid and autumn amitraz treatment for varroosis control. Veterinary Research Communications, 50(5). doi: 10.1007/s11259-026-11440-9.
- Tokarev, Y. S., Huang, W.-F., Solter, L. F., Malysh, J. M., Becnel, J. J., & Vossbrinck, C. R. (2020). A formal redefinition of the genera Nosema and Vairimorpha (Microsporidia: Nosematidae) and reassignment of species based on molecular phylogenetics. Journal of Invertebrate Pathology, 169, 107279. doi: 10.1016/j.jip.2019.107279.
- Yadró Garcia, C. A., Henriques, D., Cilia, G., et al. (2026). Contrasting whole-genome diversity patterns and adaptation in honeybees from two southern European glacial refugia. iScience, 29(1), 114497. doi: 10.1016/j.isci.2025.114497.
¿Quieres dejar un comentario sobre este artículo?